
2026-09-15
模型相关
寡核苷酸药物作为新一代治疗分子实体,近年来获批数量快速增长,对其生物分析方法的灵敏度、特异性和通量提出了更高要求。基于杂交的酶联免疫吸附测定(Hybridization-based ELISA, HELISA)凭借其高灵敏度、高通量、样品前处理简便以及对寡核苷酸各类骨架、糖基化学修饰具备较好耐受性,已成为寡核苷酸药物临床前和临床药代动力学(PK)/毒代动力学(TK)研究中最主流的定量平台之一。本文系统综述了HELISA的技术原理、主要分析模式、关键技术要素,并与LC-MS/MS、qPCR等平台进行横向比较,讨论了代谢产物交叉反应、短序列等核心挑战及最新解决方案,最后展望了该领域的发展方向。
关键词:杂交ELISA;寡核苷酸药物;生物分析;药代动力学;配体结合测定
一、引言
寡核苷酸(Oligonucleotide, ON)药物是一类人工合成的短链核酸治疗药物,主要类别包含反义寡核苷酸(ASO)、小干扰RNA(siRNA)、微小RNA调节剂与核酸适配体(Aptamer)。其中,ASO、siRNA及微小RNA调节剂通常由12–30个核苷酸组成,可通过Watson-Crick碱基互补配对靶向特定RNA序列,进而调控基因表达;核酸适配体长度范围更广,主要依赖自身三维构象与靶蛋白结合,作用机制不依赖碱基互补配对。
自1998年全球首款ASO药物Fomivirsen获批以来,寡核苷酸药物经历了近三十年的发展,并在2016年后进入商业化爆发期。截至2026年上半年,全球已有超过20款寡核苷酸药物获批上市。适应症已从最初的感染性疾病拓展至脊髓性肌萎缩症(SMA)、杜氏肌营养不良(DMD)、遗传性转甲状腺素蛋白淀粉样变性(hATTR)、家族性高胆固醇血症、血友病等罕见病及慢性代谢性疾病。与此同时,GalNAc偶联、脂质纳米颗粒(LNP)递送、抗体-寡核苷酸偶联物(AOC)等新型递送技术不断涌现,硫代磷酸酯(PS)骨架、锁核酸(LNA)、2'-MOE、2'-F及肽核酸(PNA)等化学修饰显著提升了药物的代谢稳定性和靶标亲和力。
表1. 已上市代表性寡核苷酸药物信息
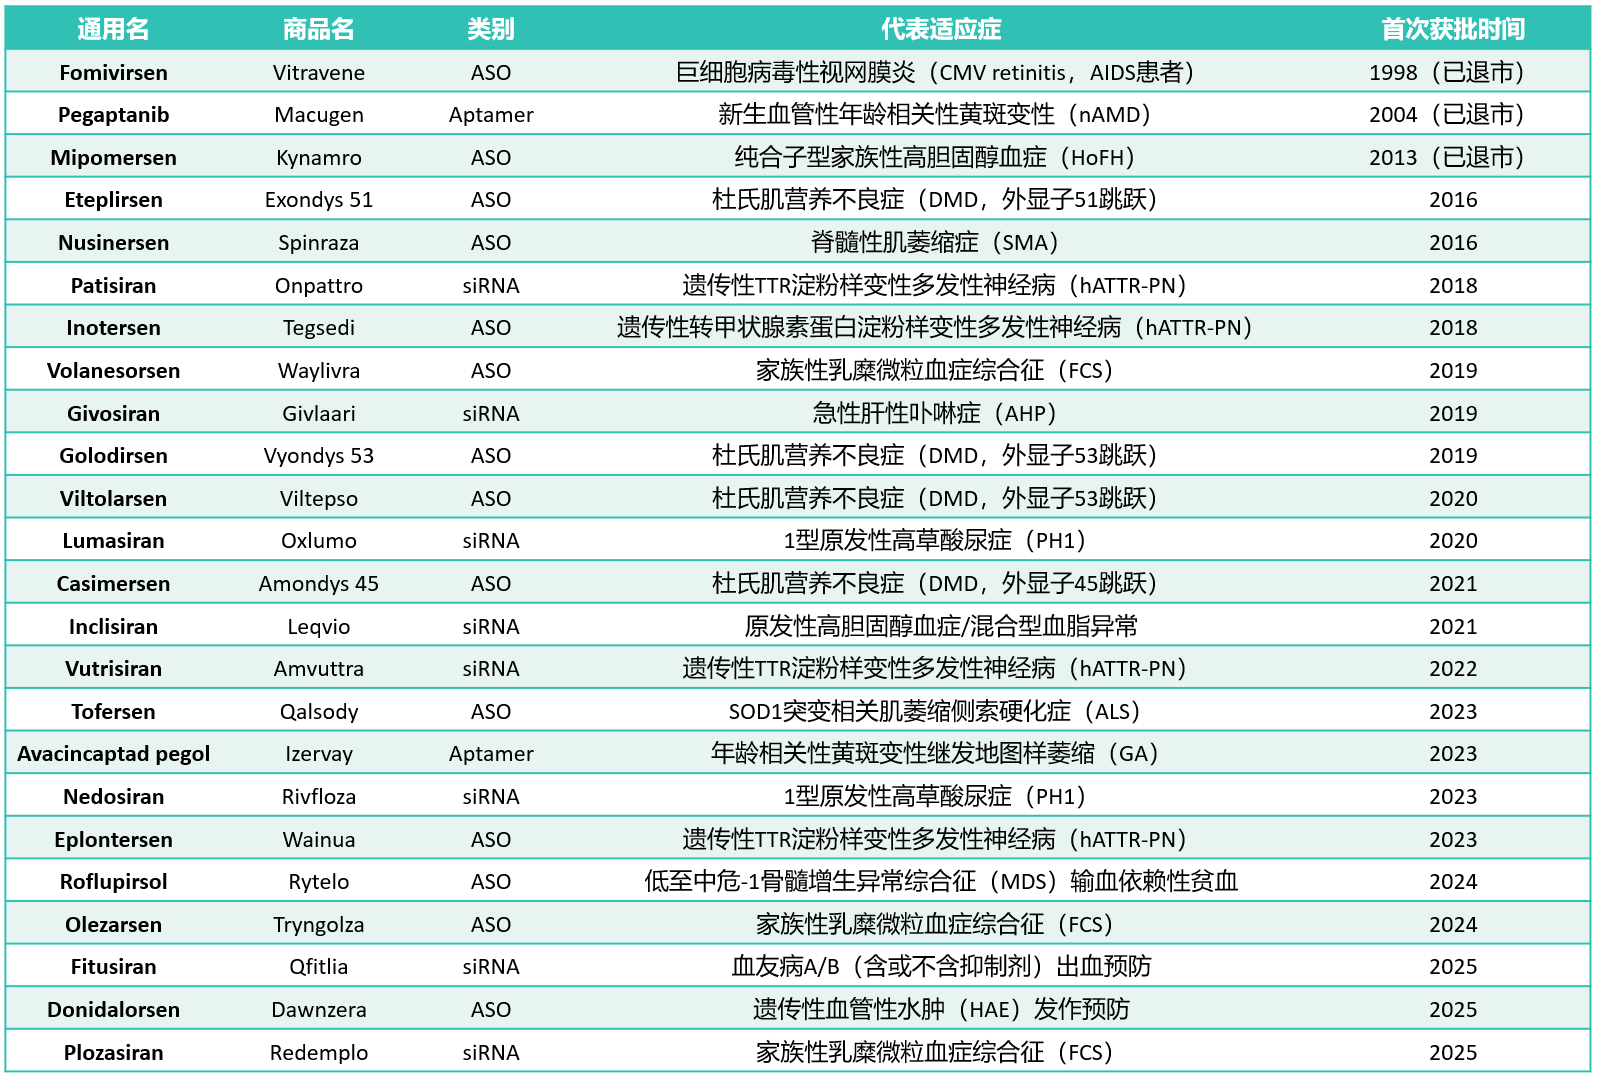
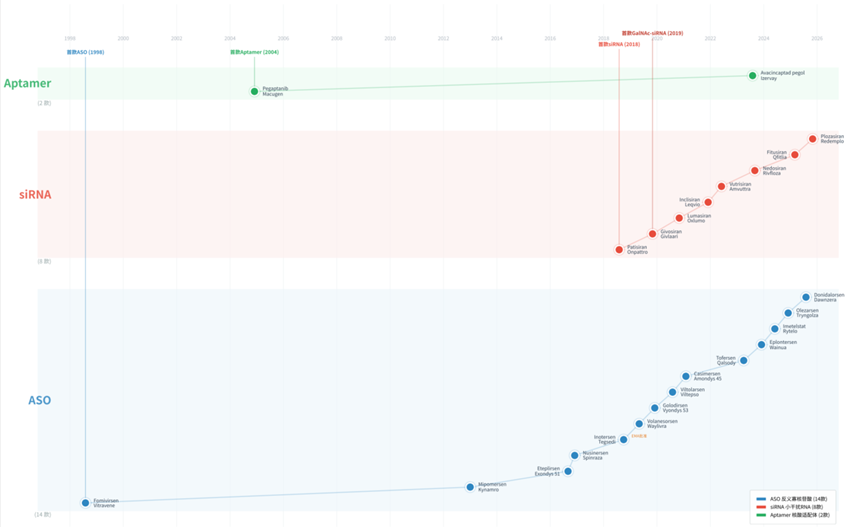
图1. 已上市寡核苷酸药物时间线
寡核苷酸药物在体内易被血浆和组织核酸酶降解为N-1、N-2等链缩短代谢产物,且组织分布广泛(肝、肾、脾、肌肉等),给药剂量低、消除相浓度极低。这些特点对生物分析方法提出了严峻挑战:需要同时具备高灵敏度(pg/mL~ng/mL级)、高特异性(区分全长药物与代谢产物)、高通量(支持大规模PK/TK研究)以及广泛的基质适用性(血浆、血清、组织匀浆、尿液、脑脊液等)。
目前寡核苷酸生物分析的主流平台包括液相色谱-串联质谱(LC-MS/MS)、杂交ELISA(HELISA)/MSD电化学发光(ECL)、实时荧光定量PCR(qPCR/RT-qPCR)、杂交-荧光检测(LC-FL)以及放射性同位素标记法等。其中,HELISA及其衍生的MSD ECL平台因兼具高灵敏度与高通量优势,已成为行业内支持监管申报的核心方法之一。
二、杂交ELISA的基本原理与分析模式
1、基本原理
HELISA的核心原理是利用核酸碱基互补配对,通过序列特异性探针与靶标寡核苷酸杂交,形成稳定的探针-靶标复合物,再经酶促反应或电化学发光信号实现定量。捕获探针通常5'端标记生物素(Biotin),通过链霉亲和素(Streptavidin/NeutrAvidin)包被的微孔板固定;检测探针则标记地高辛(Digoxigenin, Dig)或荧光/发光基团,随后通过抗地高辛抗体-辣根过氧化物酶(Anti-Dig-HRP)偶联物或SULFO-TAG抗体进行信号转化。
根据探针数量、是否引入连接酶以及杂交模式的不同,HELISA可细分为以下五种主要分析模式。不同分析模式在操作复杂度、特异性、动态范围和适用靶标长度上各有侧重,方法开发时应结合药物代谢特征和监管要求进行选择。
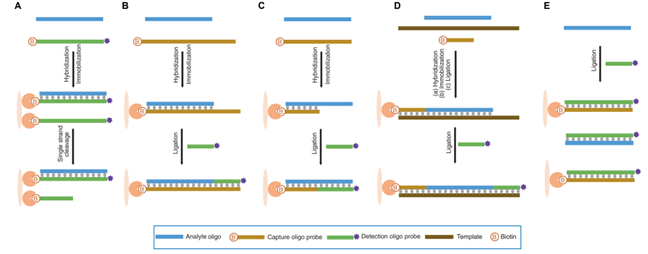
图2 杂交ELISA五种主要技术分析模式原理示意图
(A 一步法;B 两步法/连接法;C 夹心法;D 双结合法;E 竞争法)
2、一步法(单探针核酸酶法)
一步法仅使用一条同时标记生物素和检测标签的单链探针,与靶标寡核苷酸互补杂交形成双链体。未杂交的单链探针可被 S1 核酸酶或微球菌核酸酶(Micrococcal Nuclease, MNase)优先降解,杂交形成的双链体得到保留,再通过检测标签产生光信号或显色信号。该方法对实验条件要求低,但无法区分全长药物与链缩短代谢产物,且短序列靶标易发生交叉杂交。
优点:操作简便,仅需一条探针。
缺点:无法区分全长寡核苷酸与链缩短代谢产物,易发生交叉杂交导致浓度高估;对短序列靶标特异性不足。
3、两步法(杂交-连接法,Hybridization-Ligation ELISA, HL-ELISA)
两步法使用捕获探针和检测探针。捕获探针除包含与靶标互补的核心序列外,还带有一段约9个核苷酸的额外序列,可与检测探针的5'端互补。靶标与捕获探针杂交后,在T4 DNA连接酶作用下,检测探针通过磷酸-羟基连接反应与靶标共价连接,未连接的单链核酸被S1核酸酶水解去除。由于连接酶对3'末端具有高度选择性,该方法可有效排除3'端降解代谢产物的干扰。
优点:连接酶的引入显著提高了特异性,可有效区分3'端降解代谢产物;适合较短序列的寡核苷酸分析。
缺点:无法区分5'端降解代谢产物;连接效率受序列和化学修饰影响较大。
4、夹心法(Sandwich Hybridization Assay)
夹心法使用两条独立探针:生物素标记的捕获探针和地高辛标记的检测探针,分别与靶标寡核苷酸的不同区域互补杂交,形成「捕获-靶标-检测」三明治结构。该方法无需连接酶,操作步骤少,信号稳定,最适用于长度大于25个核苷酸的常规ASO或siRNA药物。
优点:操作简便,无需连接酶,信号稳定。
缺点:与一步法类似,受代谢产物交叉反应影响;短序列靶标因探针长度受限导致特异性下降。
5、双结合法(Dual-Hybridization / Template Assay)
双结合法引入第三条模板探针,可同时与捕获探针、检测探针和靶标寡核苷酸互补,在T4 DNA连接酶作用下将三条核酸链连接成完整双链体。由于需要同时满足三处序列互补和末端连接,该分析模式具有最高的序列特异性,几乎不受N-1、N-2等核酸酶解代谢产物的干扰。
优点:特异性最高,可有效排除N-1、N-2等代谢产物干扰。
缺点:操作最复杂,需要三条探针,方法开发周期较长。
6、竞争法(Competitive Hybridization Assay)
竞争法中,靶标寡核苷酸与生物素标记的同序列探针竞争性地结合包被在板上的互补检测探针。靶标浓度越高,标记探针可结合的固相探针越少,信号越低,即浓度与响应信号成反比。竞争法不依赖双探针夹心结构,当靶标序列较短、夹心法或连接法探针设计受限时,可作为可行的替代方案。
优点:当靶标序列较短、夹心法/连接法探针设计受限时,可作为替代方案。
缺点:同样无法区分全长与代谢产物;动态范围较窄。
7、分析模式选择策略
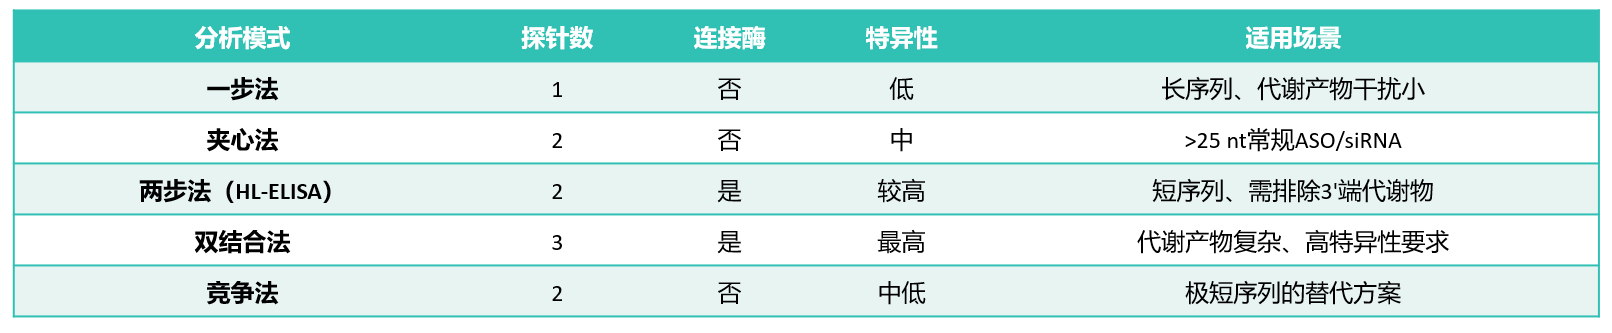
在实际方法开发中,分析模式选择需综合考虑靶标长度、已知代谢谱、特异性要求和方法开发周期:对于长序列、代谢产物干扰较小的药物,可优先考虑一步法或夹心法;需要排除3'端代谢产物时,推荐两步法;代谢谱复杂、对特异性要求极高的项目,建议采用双结合法;极短序列则可考虑竞争法。
表2. 分析模式特点
三、关键技术要素
1、探针设计与化学修饰
探针设计是 HELISA 方法开发的核心环节,直接决定方法的灵敏度、特异性和动态范围。设计原则包括:
捕获探针与检测探针的 Tm 值应尽量接近,差异控制在 ±5°C 以内,避免一条探针已杂交而另一条尚未结合的情况。
杂交温度通常设置在 40 ~ 50°C,探针 Tm 值应比杂交温度高 15 ~ 25°C,以确保杂交效率。
单条探针长度建议 12 ~ 20 nt,两条探针合计覆盖靶标序列的 2/3 以上,确保杂交亲和力。
LNA(Locked Nucleic Acid)是目前最常用的探针亲和力增强修饰,每个 LNA 残基可使 Tm 升高 2 ~ 8°C, LNA修饰的探针可大幅提升靶标特异性和检测灵敏度。
探针 GC 含量建议控制在 40% ~ 60%,GC 过低则 Tm 不足,GC 过高则易产生非特异性结合和二级结构。探针 3' 端避免为 A(A:T 配对末端稳定性差),优先以 G 或 C 结尾以提高末端杂交稳定性。
建议在方法开发初期设计 2 ~ 3 套候选探针组合(不同结合区域、不同 LNA 修饰方案),比较动态范围、LLOQ 和 S/N 比,淘汰性能明显较差的组合,选择基质影响最小的组合。
2、检测平台:ELISA vs MSD
传统HELISA采用辣根过氧化物酶(HRP)催化TMB等底物产生显色信号,常见LLOQ范围为0.5 ~ 5 ng/mL,适用于大多数临床前和临床PK研究中常规浓度样品的定量。其设备普及率高、试剂成本较低,是早期方法开发和筛选阶段最常用的检测形式。
MSD电化学发光(ECL)平台采用SULFO-TAG作为信号标签,通常标记在抗地高辛抗体上而非直接标记探针。SULFO-TAG分子量小、空间位阻低,对探针-靶标杂交反应影响小;电化学反应产生高效、稳定、连续的发光信号,背景极低,动态范围可达4~5个数量级,常见LLOQ为0.05 ~ 0.5 ng/mL,是目前HELISA类方法中灵敏度最高的平台之一。在已上市药物的临床研究中,eplontersen(治疗hATTR的GalNAc-ASO药物)的血浆谷浓度即采用经验证的杂交ECL法定量,LLOQ低至0.129 ng/mL。
四、与其他生物分析平台的横向比较
1、平台比较
Janssen研发团队(Agrawal等,2024)首次针对同一siRNA分析物(SIR-2)同时开发了四种平台方法——Hybrid LC-MS、SPE-LC-MS、HELISA和SL-RT-qPCR,并对同一PK研究样品进行系统比较,为不同研发阶段的平台选择提供了最直接的循证依据。
表3. 不同平台比较
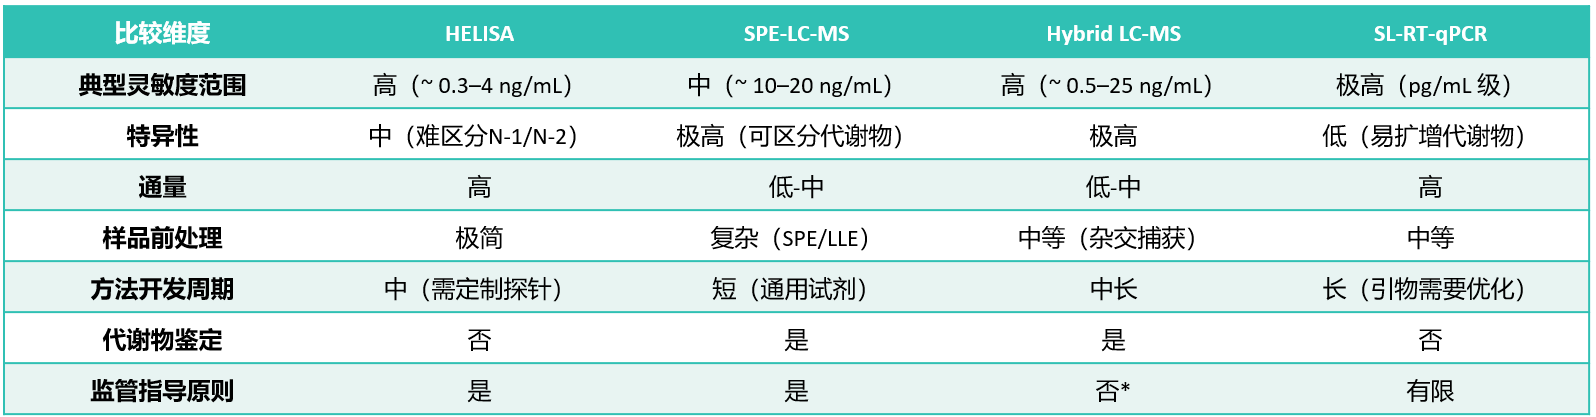
注:“* ”表示Hybrid LC-MS目前尚无单独专属指导,遵循ICH M10 LC‑MS 相关的指导原则
该研究的核心发现包括:
所有四种平台均能产生可比的PK数据,但非LC-MS方法(HELISA和qPCR)倾向于给出更高的检测浓度,推测是由于同时定量了母体分析物及其代谢产物,反映了方法特异性上的差异。
所有方法平台在经过充分验证后,一般均可达到支持监管申报的标准,关键在于根据研究目的和药物特征进行合理选择。
3、平台选择决策建议
优先考虑特异性和代谢物鉴定 → LC-MS/MS(SPE或杂交捕获)
优先考虑灵敏度和通量,且代谢产物干扰可控 → HELISA / MSD ECL
极低浓度(如CSF、长半衰期消除相)→ MSD ECL或qPCR
早期发现阶段需快速获取PK数据 → LC-MS/MS(无需定制探针,通用性强)
大规模临床前TK研究 → HELISA / MSD ECL(高通量、低成本)
值得注意的是,目前已获批的siRNA药物中多数采用LC-MS/MS支持监管申报,但HELISA和LC-FL也已成功用于多个ASO及siRNA药物的监管申报。随着探针设计、化学修饰和检测技术的进步,HELISA在寡核苷酸生物分析中的应用比例正在回升,并与LC-MS/MS形成互补。
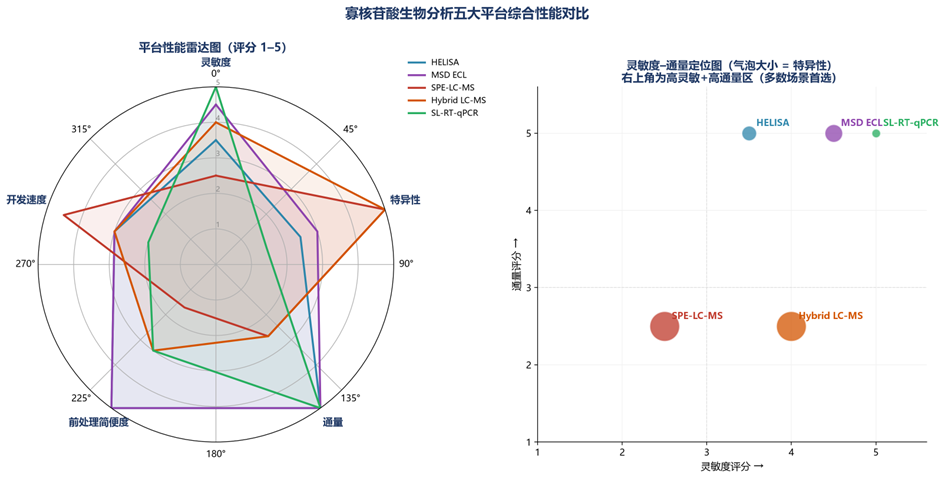
图3. 寡核苷酸生物分析五大平台综合性能对比
五、核心挑战与解决方案
1、代谢产物交叉反应
这是HELISA面临的最大挑战。寡核苷酸在体内经核酸外切酶降解产生N-1、N-2等链缩短代谢产物,这些代谢产物与全长药物序列高度相似,可与探针发生交叉杂交,导致浓度被高估。
解决方案:
分析模式选择:优先采用两步法(HL-ELISA)或双结合法,利用T4 DNA连接酶的末端特异性排除3'端降解产物。
探针设计优化:将探针结合区域设计在代谢产物缺失的序列端,或缩短探针长度以降低与代谢产物的杂交效率。
代谢物交叉反应评估:在方法验证中合成并测试所有主要代谢产物在其预期最高浓度下的交叉反应率,确保对全长药物定量的干扰在可接受范围内(行业实践通常不高于20%,需结合项目和监管要求设定)。
联合LC-MS:先用LC-MS开展代谢稳定性研究,明确主要代谢产物谱,再有针对性地设计HELISA探针和验证策略。
2、短序列寡核苷酸的特异性
对于长度小于15个核苷酸的短寡核苷酸,捕获探针和检测探针的可用结合区域有限,探针长度缩短导致杂交特异性和亲和力下降,夹心法和连接法均难以适用。
解决方案:
竞争法作为替代:当夹心法和连接法因序列过短而无法设计时,竞争杂交法是可行的替代方案。
LNA修饰增强亲和力:通过LNA修饰在短探针中维持足够的Tm值和特异性。
双结合法:引入模板探针,通过三重复合体提高整体特异性。
3、组织样品分析
寡核苷酸药物主要分布于肝、肾、脾等组织,组织匀浆基质复杂,蛋白质和脂质含量高,可能干扰杂交反应。
解决方案:
蛋白酶K消化:加入蛋白酶K和非离子表面活性剂破坏细胞膜和蛋白质,释放结合的寡核苷酸。
适当稀释:通过空白基质稀释降低基质干扰。
方法验证中纳入组织基质:对每种目标组织单独进行选择性、准确度和精密度验证。
4、探针试剂的质量与供应链
HELISA方法高度依赖定制合成的探针,探针合成质量(纯度、标记效率、全长率)直接影响方法性能。不同供应商、不同批次间的质量差异可能导致方法转移失败,建议选择可靠的探针供应商,明确纯度(通常≥85%)和标记效率要求,探针尽量保持批次不变,同时也要建立探针批次桥接策略。
六、最新进展与未来展望
1、杂交捕获与LC-MS的融合(Hybrid LC-MS)
将杂交ELISA 中核酸序列特异性杂交捕获的原理与 LC‑MS/MS 高结构分辨能力深度耦合,构建 Hybrid LC‑MS(杂交捕获‑液质联用)一体化分析平台。该技术以生物素修饰 LNA 锁核酸探针,从血清、组织匀浆等复杂生物基质中特异性富集靶标寡核苷酸药物,洗脱后直接通过 LC‑MS/MS 完成定性与定量检测。
该方案一方面继承杂交ELISA 依靠碱基互补实现靶标特异性抓取、可实现≤1 ng/mL 级别的检测灵敏度;另一方面发挥液质平台能够精准区分寡核苷酸代谢产物、长度异构体、序列突变体的优势,解决传统杂交ELISA 无法直接分辨代谢物、易受交叉反应干扰的痛点。
目前该融合技术是寡核苷酸生物分析领域增速最快的前沿方向,尤其适用于低暴露水平样本以及需要同步区分母体药物与多种降解片段的 PK/TK 研究。
2、自动化与高通量
依托 TECAN、Hamilton 全自动液体处理工作站、自动洗板设备、HP D300 数字分液系统完成杂交ELISA 前处理全流程自动化,实现探针孵育、洗涤、酶促反应 / 洗脱步骤无人值守运行。
自动化方案不仅显著压缩整体试验时长、消除人工移液、孵育时长不一致引入的系统偏差,单批次可并行处理上百份生物样本,可支撑大规模非临床毒代 (TK)、临床药代 (PK) 样品分析需求,同时保障板间、批间数据的重现性,契合当前寡核苷酸药物大批量样本分析的 ICH‑M10 合规性要求。
3、多重检测能力
基于 MSD‑ECL 电化学发光平台开发的多重杂交ELISA 方案,借助多电极阵列微孔板,单孔内可同时完成多条不同序列寡核苷酸的杂交捕获与信号读取。该多重检测模式在联合给药、复方寡核苷酸制剂、母体药物 + 多种代谢物同步监测场景具备显著优势;在减少样品消耗量的同时,大幅提升检测效率,降低基质消耗与试验成本,适合生物样本稀缺的动物或临床样本检测。
七、结论
基于杂交的酶联免疫吸附测定(HELISA)及其衍生的MSD电化学发光平台,凭借高灵敏度、高通量、极简样品前处理和对化学修饰的良好包容性,已成为寡核苷酸药物临床前和临床PK/TK生物分析的主流平台之一。从最初的单探针一步法发展到如今的杂交-连接法、双结合法以及MSD ECL高灵敏度检测,HELISA的性能边界不断拓展。
然而,HELISA在代谢产物交叉反应和短序列分析等方面仍面临固有局限。实践中应根据研究阶段、靶标特性和代谢谱,合理选择分析模式,严格遵循ICH M10的验证要求,必要时与LC-MS/MS平台互补使用——LC-MS用于代谢物鉴定和高特异性定量,HELISA用于大规模高通量PK/TK研究。
随着Hybrid LC-MS融合平台等新兴技术的发展,寡核苷酸生物分析正进入多平台协同、灵敏度与特异性兼优的新阶段。对于生物分析从业者而言,深入理解HELISA的原理、分析模式选择和优化策略,同时关注跨平台比较和技术前沿,将为寡核苷酸药物的高效研发提供坚实的分析支撑。
澎立生物DMPK部门现已成功建立HELISA/MSD-ECL寡核苷酸定量分析平台,可完成多种寡核苷酸药物的方法开发、验证与大规模PK/TK样本检测,严格遵循ICHM10要求,为寡核苷酸药物研发提供合规的生物分析解决方案。
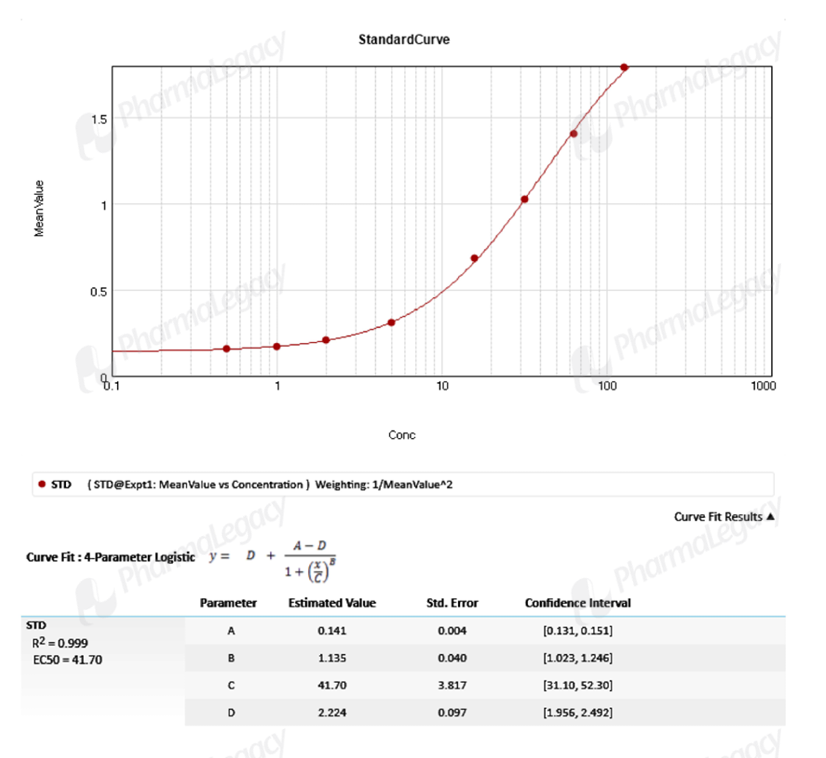
图4. 澎立生物 HELISA法定量寡核苷酸药物的典型校准曲线
参考文献
1. Burki U, Keane J, Blain A, O'Donovan L, Gait MJ, Laval SH, Straub V. Development and application of an ultrasensitive hybridization-based ELISA method for the determination of peptide-conjugated phosphorodiamidate morpholino oligonucleotides. Nucleic Acid Ther. 2015;25(5):275-284.
2. Haegele JA, Boyanapalli R, Goyal J. Improvements to hybridization-ligation ELISA methods to overcome bioanalytical challenges posed by novel oligonucleotide therapeutics. Nucleic Acid Ther. 2022;32(4):350-359.
3. Thayer MB, Lade JM, Doherty D, Xie F, Basiri B, Barnaby OS, Bala NS, Rock BM. Application of locked nucleic acid oligonucleotides for siRNA preclinical bioanalytics. Sci Rep. 2019;9(1):3566.
4. Thayer MB, Humphreys SC, Chung KS, Lade JM, Cook KD, Rock BM. POE immunoassay: plate-based oligonucleotide electro-chemiluminescent immunoassay for the quantification of nucleic acids in biological matrices. Sci Rep. 2020;10(1):10425.
5. Dillen L, Sips L, Greway T, Verhaeghe T. Quantitative analysis of imetelstat in plasma with LC-MS/MS using solid-phase or hybridization extraction. Bioanalysis. 2017;9(23):1859-1872.
6. Li P, Dupuis JF, Vrionis V, Mekhssian K, Magee T, Yuan L. Validation and application of hybridization liquid chromatography-tandem mass spectrometry methods for quantitative bioanalysis of antisense oligonucleotides. Bioanalysis. 2022;14(9):589-601.
7. Agrawal K, Calliste LK, Ji S, Xu S, Ayers SA, Jian W. Comparison of multiple bioanalytical assay platforms for the quantitation of siRNA therapeutics. Bioanalysis. 2024;16(13):651-667.
8. Song Z, Lu A, Yuan L. Analyte and probe melting temperature guided method development strategy for hybridization LC-MS/MS quantification of siRNAs. J Pharm Biomed Anal. 2024;253:116556.
9. Agrawal K, Ji S, Jian W. Simultaneous quantification of siRNA antisense and sense strands by hybrid liquid chromatography-mass spectrometry. Bioanalysis. 2025;17(4):249-259.
10. Wang L, Ji C. Advances in quantitative bioanalysis of oligonucleotide biomarkers and therapeutics. Bioanalysis. 2016;8(2):143-155.
11. Ma M, Balasubramanian N, Dodge R, Zhang Y. Challenges and opportunities in bioanalytical support for gene therapy medicinal product development. Bioanalysis. 2017;9(18):1423-1430.
12. Kotapati S, Deshpande M, Jashnani A, Thakkar D, Xu H, Dollinger G. The role of ligand-binding assay and LC-MS in the bioanalysis of complex protein and oligonucleotide therapeutics. Bioanalysis. 2021;13(11):931-954.
13. Mu R, Yuan J, Huang Y, Meissen JK, Mou S, Liang M, Rosenbaum AI. Bioanalytical methods and strategic perspectives addressing the rising complexity of novel bioconjugates and delivery routes for biotherapeutics. BioDrugs. 2022;36(2):181-196.
14. ICH. M10 Bioanalytical Method Validation and Study Sample Analysis.24 May 2022.

在线咨询

请添加“业务小助手”企业微信

电话咨询
业务咨询
中国:
+86-130-0328-0039(业务咨询)
+86(21)6176-5100(总机)
Email:info@pharmalegacy.com
海外:
+1-617-803-9415(海外业务咨询)
+86-021-6176-5100*8051(海外业务咨询)
Email:info@pharmalegacy.com
投资者:
+86(21)6176-5100*8002
Email:IR@pharmalegacy.com

TOP


 返回


 返回列表